

Epiphyllum属とは
Epiphyllum(エピフィルム)属は、メキシコから中南米にかけて分布する森林サボテンの仲間です。
日本では月下美人(Epiphyllum oxypetalum)がよく知られていますが、同じ属には花の大きさや形、茎の姿が異なるさまざまな原種が存在します。
多くは樹木などに着生し、葉のように見える扁平な茎を伸ばします。花は夜間に咲く種類が多く、大輪で芳香を放つものから、比較的小さな花を咲かせるものまであります。
また、園芸で「クジャクサボテン」や「エピフィルム」と呼ばれる植物には、Disocactus属などを交配親とする園芸品種も多く含まれます。
ここでは園芸品種ではなく、主に野生由来のEpiphyllum属の原種と、その分類、分布について紹介します。
EpiphyllumとDisocactus、実生の違い
Epiphyllum属とDisocactus属は、どちらも葉のような扁平な茎を持つ森林サボテンですが、種子から育ててみると大きな違いがあります。
当圃場で栽培しているEpiphyllum属は、双葉の次に現れる茎が、すでに扁平な形をしています。
一方、Disocactus属では、最初は棘を持つ柱状の茎を伸ばし、成長して3〜4番目の茎になる頃から、次第に扁平な茎へと変化していきます。
この違いについて、20数年前、三橋氏はその著書の中で、Disocactusは一度乾燥地へ進出してから森林へ戻った植物、Epiphyllumは森林で進化を続けた植物という考え方で説明しています。実生の姿に植物の進化の歴史を見いだそうとする、深い洞察ですねぇスギ。
現在では、この違いはどう考えられるのでしょうか。
一つは、森林の樹上環境への適応です。
樹上では、限られた光を効率よく利用することが重要になります。Epiphyllumが早い段階から扁平な茎を作ることは、光合成に利用できる面積を早く確保するうえで有利だったかもしれません。
もう一つは、茎の発達する順序や時期の違いです。
植物は、成長の過程で姿を変えていきます。Disocactusが柱状の茎を経て扁平化するのに対し、Epiphyllumでは扁平な茎を作る仕組みが、より早い段階から働いている可能性があります。
Almeidaら(2013)は Epiphyllum phyllanthus の実生の発達を研究し、子葉の間から伸びる茎が扁平な葉状茎へと発達する過程を報告しています。
しかし、実生の形だけから、その祖先が砂漠を経由したかどうかを判断することはできません。また、扁平化する時期の違いが、どのような環境で進化したのか十分には分かっていません。
同じような扁平な茎を持つ植物でも、そこに至る成長の道筋は異なる。
花や成株の姿だけでなく、種子から育てることで見えてくる森林サボテンの面白さと言えます。
分類と分子系統
Epiphyllum属の分類は、長い間さまざまな解釈がなされてきました。
かつてEpiphyllum属に含まれていた植物の一部は、現在ではDisocactus属に分類されています。
2026年現在、英国王立植物園キューのPlants of the World Onlineでは、Epiphyllum属に含まれる種として10種を認めています。
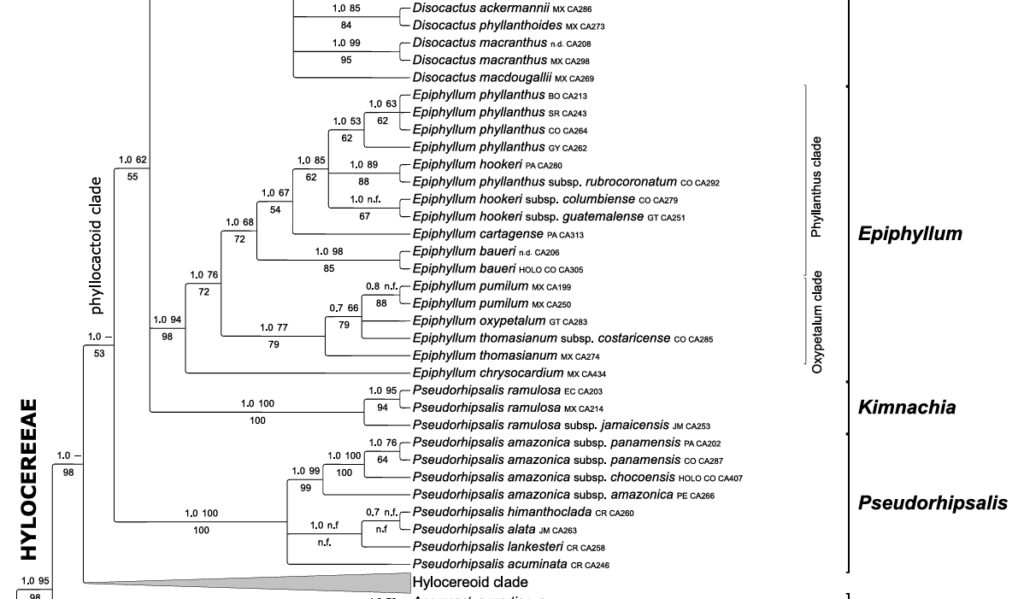
また、DNAを用いたKorotkovaら(2017)の研究では、Epiphyllum属の中に系統的なまとまり、” clade “が示されています。
特に注目したいのは、E. oxypetalum や E. pumilum を含む Oxypetalum clade と、E. phyllanthus、E. hookeri、E. cartagense などを含む Phyllanthus clade です。
面白いことに、E. phyllanthus の亜種として扱われてきた rubrocoronatum は、この解析では phyllanthus よりも hookeri に近い位置に配置されています。
これは、従来の分類名や花の形から想像する近縁関係と、DNAによって示される関係が必ずしも一致しない例といえます。
しかし、この研究には解析されていない種や亜種、例えばpittieri(宵町孔雀)などもあり、属内のすべての関係が確定したわけではありません。
Epiphyllum属の採集地分布マップ
Epiphyllum属の種が、実際にどのような地域で採集されてきたのか。
その地理的な関係を視覚的に表せないかと考え、フィールドナンバーや植物標本の産地情報をもとに、採集地分布マップを作成しました。
地図では、種ごとに色を分けています。分類上の異名とされる植物についても、採集時に使用されていた名前を可能な限り残し、比較できるようにしています。
地図から見えてくること
1.メキシコ南部から中米には、多くの種の採集記録が集中している
オアハカ州、チアパス州からグアテマラ、コスタリカにかけて、複数のEpiphyllum属の記録が重なっています。
2.E. phyllanthusの分布が非常に広い
他の多くの種と比較して、E. phyllanthus は南米の広い地域に採集記録があります。ブラジル、ペルー、ボリビア、パラグアイなど、その範囲は広大です。
3.分類上まとめられる植物にも、地域的な偏りが見られる
例えば E. strictum と E. hookeri、あるいは E. caudatum と E. pumilum のように、異名の関係にある名前を区別して表示したら、採集記録の地域的な特徴が見えてきました。
4.中米と南米の地面をなぞるように眺めていくと、記録される種の組み合わせが移り変わっていく
中米から南米北西部、さらに南米南部へと地図をたどると、採集記録に登場する種の構成が変化していきます。
5.地図の空白は、植物の不在を意味しない
フィールドナンバーの資料だけでは空白だったブラジル北部や中西部にも、標本館の資料を調べることで E. phyllanthus の記録が確認できました。
※この地図は、現在確認できた採集・標本記録を表したものであり、野生での分布域のすべてを示すものではありません。また、位置を正確に特定できない記録には、地域や地名の代表位置を使用している場合があります。
広い分布と、自家受粉の関係
今回の分布図で、特に興味深いのが E. phyllanthus の広い分布です。
なぜ、この種はほかのEpiphyllum属の植物と比べて、これほど広い地域に生育しているのでしょうか。
その理由の一つとして、自家受粉によって単独でも次世代を残せる能力が関係している可能性を考えています。
当圃場で栽培している種の中で、E. phyllanthus の地域種もしくはその近縁と推測できる Epiphyllum sp. Peru と Epiphyllum sp. Aqua Santa は、いずれも他の株から隔離された状態でも自然に結実します。
ちなみに、E. rubrocoronatum も、異なる系統の花がない状態で結実することを確認しています。E. guatemalense ‘Monstrose’ についても、放任状態での結実が見られます。
一方、当圃場で栽培している E. cartagense、E. hookeri、E. pittieri、E. strictum、E. chrysocardium、E. oxypetalum、E. pumilum では、同様の放任結実は確認していません。
これらは当圃場での栽培観察であり、それぞれの種が自家受粉できるかどうかを確定した結果ではありません。しかし、植物の分布と繁殖方法を考えるうえで、興味深い違いです。
種子が遠くまで運ばれたとき、そこに別個体が存在しなくても子孫を残せる植物は、新しい地域に定着するうえで有利になる可能性があります。
これは、森林サボテンの中でも広い分布を持つ Rhipsalis baccifera を考える際にも通じる視点です。
E. phyllanthus には、花が開かないまま自家受粉する系統が知られています。
Süpplie(2004)は、ボリビアのAmboró国立公園に由来する植物を、Epiphyllum phyllanthus subsp. cleistogamus として記載しました。
この植物は、花を開かせずに結実し、種子を形成することが報告されています。
興味深いことに、当圃場の Epiphyllum sp. Aqua Santa も花が非常に開きにくく、ときには最後まで開かずに結実します。
これは、もしかしたら、幾世代もの時を重ねたその先には、この植物もまたアメリカ大陸を越え、遠く離れた土地に根を下ろしているのではないか。
そんな遠い未来の姿を想像してしまいます。
遺伝的多様性よりも、自己増殖の方が生存に有利?
植物にとって、異なる個体との交配は遺伝的多様性を生み出し、環境の変化に適応していくための重要な仕組みです。
しかし、植物が必ずしも遺伝子の異なる同種に出会えるとは限りません。
例えば、鳥によって運ばれた種子が、遠く離れた森林の樹上で発芽したとします。周囲に同じ種の別個体がなくても、自家受粉できる植物なら、たった一株から子孫を残すことができます。
広い分布を持つ Rhipsalis baccifera や Epiphyllum phyllanthus にも、こうした繁殖能力が分布の拡大を支えてきた可能性があります。
さらに、森林サボテンには、茎から根を出しやすい面があります。
伸びた茎が新しい場所に根を下ろし、ときには折れた茎から新しい株が育つ。こうして同じ遺伝子を持つ株の集まり、すなわちコロニーを広げながら、少しずつ生育場所を移していくことも考えられます。
もちろん、自家受粉や栄養繁殖(クローン)に頼りすぎれば、遺伝的多様性を維持しにくくなるという不利な面はあります。
遠くへ広がるための種子、足元で生き延びるための発根能力、そして変化に対応するための遺伝的多様性。
どれか一つが優れているのではなく、植物はそれぞれの環境の中で、異なる生存戦略を発達させてきたのでしょう。
森林サボテンの分布や繁殖を調べていくと、その姿の奥にある進化の歴史が少しずつ垣間見えますねぇスギ。
今年のノーベル化学賞では、日本の硤合憲三教授とフランスのアンリ・カガン教授の共同受賞である、わずかな分子の偏りが、反応を重ねることで大きく増幅される研究が注目されました。
植物の繁殖とは異なる仕組みですが、たった一株の定着から始まり、幾世代もの時を経て、やがて広大な地域へと分布を広げていく。
そんな可能性を想像すると、植物が持つ自己増殖の力にも、また違った面白さを感じます。
参考文献・資料
- Korotkova, N., Borsch, T. & Arias, S. (2017). A phylogenetic framework for the Hylocereeae (Cactaceae) and implications for the circumscription of the genera. Phytotaxa 327(1): 1–46.
- de Vos, J. M. et al. (2025). Phylogenomics and classification of Cactaceae based on hundreds of nuclear genes. Plant Systematics and Evolution 311: 28.
- Süpplie, F. (2004). Epiphyllum phyllanthus subsp. cleistogamum subsp. nov. Succulenta 83(5): 221–222.
- Royal Botanic Gardens, Kew. Plants of the World Online.
- Caryophyllales Network / EDIT Taxonomic Editor.
- Cactus and Succulent Field Number Database.
- UMBER KELP 栽培・開花・結実記録。
